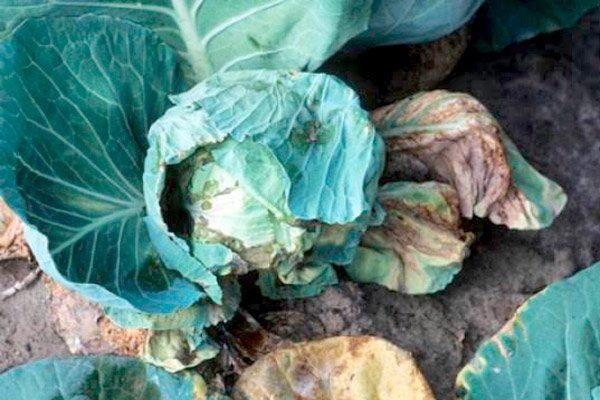
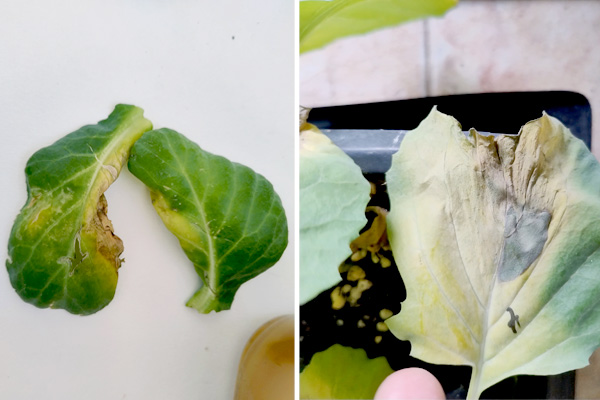
Abstract Il marciume nero è riconosciuto come la più significativa malattia batterica del cavolo e di altre colture della famiglia delle Brassicaceae, a causa della sua ampia diffusione, elevata aggressività e significative perdite economiche. L'agente causale della malattia è il batterio Xanthomonas campestris pv. campestris. L'infezione può iniziare praticamente in qualsiasi fase dello sviluppo della pianta — dalla germinazione del seme infetto fino alla piena maturità. La malattia può rimanere latente per settimane, il che complica la diagnosi precoce e consente una diffusione inosservata all'interno della coltura. Oltre ai semi infetti, la malattia si diffonde anche dal suolo, dai residui vegetali, nonché da vari fattori naturali e meccanici come vento, insetti, schizzi d'acqua, pioggia o macchinari agricoli. Parole chiave: marciume nero, batterio, famiglia delle Brassicaceae Il marciume nero è una delle più gravi e distruttive malattie batteriche delle colture della famiglia delle Brassicaceae, distribuita in tutte le zone agro-climatiche del mondo (Singh and Dhar, 2011). Colpisce sia colture ortive come cavolo, cavolfiore, broccoli, rapa e ravanello, sia specie crucifere selvatiche che fungono da serbatoio per il patogeno. Ciò rende la malattia particolarmente difficile da controllare, poiché le fonti di infezione sono spesso situate al di fuori delle aree coltivate. L'agente causale Xanthomonas campestris pv. campestris (Pammel) Dowson è un batterio Gram-negativo, aerobico, trasmesso per seme, caratterizzato da elevata adattabilità, significativa diversità di razze e capacità di penetrazione sistemica nei tessuti vascolari. La malattia è stata descritta come "una delle più devastanti" per le colture crucifere, con perdite nelle regioni gravemente colpite che raggiungono fino al 30% della resa (Preethi & Umesha, 2025). In condizioni favorevoli — forti precipitazioni, elevata umidità e temperature tra 25 e 30°C — la malattia diventa ancora più dannosa e porta a perdite significative (Vega Álvarez et al., 2021). L'infezione può verificarsi in qualsiasi fase dello sviluppo della pianta — dalla germinazione dei semi infetti fino alla maturità. La principale via di diffusione è attraverso i semi infetti, dove anche livelli minimi del batterio possono portare a epidemie (Liu et al., 2022). Questo è un problema particolare nella produzione di piantine trapiantate, dove un gran numero di piante viene coltivato in uno spazio limitato e l'infezione può diffondersi rapidamente. Il patogeno viene trasmesso anche attraverso terreno contaminato, residui vegetali, vento, insetti, aerosol, acqua di irrigazione, pioggia e macchinari agricoli (Vicente and Holub, 2013). Xanthomonas campestris pv. campestris sopravvive nei residui vegetali fino a due anni, il che sottolinea l'importanza di buone pratiche igieniche e di una corretta gestione dei rifiuti vegetali. I batteri entrano più comunemente attraverso gli idatodi ai margini delle foglie — aperture naturali attraverso le quali le piante trasudano acqua. Gli idatodi rappresentano una sorta di "punto debole" nel tessuto fogliare, poiché sono direttamente collegati al sistema vascolare e non possiedono barriere contro i patogeni efficaci quanto l'epidermide. Quando gocce d'acqua da pioggia o irrigazione sono presenti sulle foglie, i batteri si muovono facilmente verso queste aperture e penetrano nei tessuti. Questo spiega perché i primi sintomi spesso compaiono ai bordi delle foglie — la zona dove gli idatodi sono più numerosi e più attivi. Il patogeno può anche penetrare attraverso ferite causate da macchinari, insetti, animali, pioggia o vento. Anche un danno microscopico all'epidermide è sufficiente per consentire ai batteri di entrare. Durante forti precipitazioni o grandine, il rischio di infezione aumenta bruscamente, poiché le lesioni meccaniche a foglie e steli creano numerosi punti di ingresso. Anche gli insetti che si nutrono del tessuto fogliare facilitano la penetrazione trasportando batteri su stomi e ferite. Dopo la penetrazione, i batteri si diffondono per via intercellulare, colonizzando inizialmente il mesofillo — il tessuto responsabile della fotosintesi. In questa fase precoce, l'infezione spesso rimane inosservata, poiché la pianta è ancora in grado di compensare i danni locali. Gradualmente, tuttavia, il patogeno raggiunge il sistema vascolare, dove si moltiplica intensamente e causa una rapida diffusione sistemica. Nello xilema, i batteri producono esosaccaridi ed enzimi che ostruiscono i vasi vascolari e disturbano il movimento dell'acqua. Simultaneamente, si osservano collasso dello xilema, diffusione del batterio nelle cellule parenchimatiche circostanti, morte cellulare e formazione di cavità. Queste cavità sono spesso riempite con essudato batterico, che appare come goccioline giallastre al taglio. In condizioni di clima umido e caldo, l'infezione si sviluppa estremamente rapidamente. L'elevata umidità facilita il movimento dei batteri sulla superficie fogliare, e il calore accelera la loro divisione — in condizioni ottimali, la popolazione può raddoppiare in meno di un'ora. Pertanto, i sintomi visibili possono comparire entro poche ore, specialmente nelle piante giovani i cui tessuti sono più teneri e più suscettibili alla penetrazione sistemica. I sintomi sono altamente caratteristici e includono (Figura 1): • grandi macchie clorotiche, spesso a forma di V, alla periferia delle foglie, dirette verso la nervatura centrale; • annerimento delle nervature e dei vasi vascolari nelle foglie, nei piccioli e nel fusto; • nanismo, crescita unilaterale e caduta prematura delle foglie; • avvizzimento sistemico e oscuramento dei tessuti interni; • in rapa e ravanello — marciume secco delle radici carnose; • in cavolo e cavolfiore — scolorimento e marciume delle teste. In sezione trasversale, si osservano tessuti vascolari anneriti, goccioline gialle di essudato e cavità riempite di batteri. Le aree infette sono spesso attaccate secondariamente da batteri che causano marciume molle, che distruggono i tessuti e producono un odore sgradevole. Questo deteriora ulteriormente la qualità del prodotto e lo rende inadatto al consumo o allo stoccaggio. Figura 1. Marciume nero su foglie di cavolo Numerose razze patogene di Xanthomonas campestris pv. campestris sono state segnalate in diverse specie di Brassica. Inizialmente, Vicente et al. (2001) identificarono sei razze (1–6). Successivamente, Fargier e Manceau (2007) ne aggiunsero altre tre (7–9), e recentemente due nuove razze — 10 e 11 — sono state descritte in Portogallo (Cruz et al., 2017). Attualmente sono note undici razze fisiologiche, con le razze 1 e 4 che sono le più aggressive e le più ampiamente distribuite (Lema et al., 2012a; Vicente and Holub, 2013). La resistenza al marciume nero è poligenica e coinvolge complessi meccanismi di difesa cellulare e biochimica (Deng et al., 2023). Gli approcci genomici — sequenziamento dell'intero genoma, analisi multilocus e genomica comparativa — consentono una migliore comprensione dell'evoluzione, della patogenicità e della distribuzione dei diversi ceppi. Questa conoscenza supporta i programmi di miglioramento genetico e accelera lo sviluppo di varietà resistenti. Mancano agenti curativi efficaci, quindi la gestione è prevalentemente preventiva. Il controllo del marciume nero si basa su una combinazione di approcci igienici, agrotecnici, biologici e di miglioramento genetico volti a limitare le fonti primarie di infezione e a ridurre le condizioni favorevoli allo sviluppo del patogeno. Le misure più importanti includono: • uso di semi e piantine esenti da batteri — questo è un elemento chiave, poiché la trasmissione per seme è il meccanismo primario per l'insorgenza di epidemie. Anche una quantità minima di batteri sui semi può portare a un'infezione di massa nella produzione di piantine. Pertanto, materiale seminale certificato e test regolari con metodi molecolari (PCR, Bio-PCR) sono fondamentali per un avvio sicuro del ciclo produttivo. • trattamento dei semi con acqua calda (50°C per 30 min) — questo metodo è uno dei pochi dimostrati efficaci contro Xanthomonas campestris pv. campestris. Il calore distrugge i batteri sulla superficie del seme senza danneggiare la germinazione. La procedura è particolarmente utile per i semi conservati in casa o quando si sospetta una contaminazione. • distruzione dei residui vegetali e osservanza della rotazione colturale (almeno 2 anni senza Brassicaceae) — il patogeno può sopravvivere nei residui vegetali fino a due anni, rendendo cruciale una corretta gestione dei rifiuti. Una lunga rotazione colturale interrompe il ciclo vitale del batterio e riduce il suo accumulo nel suolo. Incenerimento o aratura profonda dei residui infetti prevengono le infezioni secondarie. • evitare l'irrigazione per aspersione — gli schizzi d'acqua facilitano il movimento dei batteri sulla superficie fogliare e facilitano la loro penetrazione attraverso gli idatodi. Con l'irrigazione per aspersione, il rischio di infezione aumenta molte volte, specialmente in clima caldo. Si preferisce l'irrigazione a goccia, poiché mantiene asciutta la massa fogliare e limita la diffusione del patogeno. • controllo delle erbe infestanti della famiglia delle Brassicaceae — le specie crucifere selvatiche spesso fungono da serbatoio naturale per Xcc. Erbe infestanti come senape selvatica, colza o crucifere selvatiche possono mantenere la popolazione del patogeno nel campo anche in assenza di piante coltivate. La loro regolare rimozione riduce il rischio di infezione primaria. • trattamenti con fungicidi a base di rame a intervalli di 10 giorni per limitare la popolazione batterica superficiale — i preparati a base di rame non curano l'infezione sistemica ma riducono il numero di batteri sulla superficie fogliare e limitano le infezioni secondarie. Sono più efficaci come parte di una strategia integrata e applicati preventivamente, specialmente durante i periodi di elevata umidità. • metodi biologici — microrganismi antagonisti e induttori di resistenza — questo è un campo in rapido sviluppo. Ceppi di Bacillus, Pseudomonas e attinomiceti mostrano risultati promettenti per la soppressione di Xcc attraverso competizione, produzione di sostanze antimicrobiche o stimolazione dell'immunità vegetale. Gli induttori di resistenza attivano i meccanismi di difesa delle piante ma sono ancora in fase di studio per dosi ottimali, stabilità ed efficacia in campo (Liu et al., 2022). • strategia a lungo termine: miglioramento genetico di varietà resistenti, supportato da marcatori molecolari e selezione assistita dalla genomica — questo è l'approccio più promettente per la riduzione sostenibile delle perdite. La resistenza al marciume nero è poligenica, il che rende difficile il miglioramento genetico tradizionale. Le moderne tecnologie genomiche consentono l'identificazione di QTL associati alla resistenza e accelerano la creazione di varietà in grado di limitare lo sviluppo sistemico del patogeno. In futuro, l'editing genomico e la selezione assistita da marcatori diventeranno probabilmente lo strumento principale per il controllo della malattia. Il marciume nero rimane una delle malattie più impegnative delle crucifere perché combina elevata aggressività, facile diffusione e mancanza di un trattamento efficace. Tuttavia, la prevenzione tempestiva, un attento controllo dei semi e buone pratiche agrotecniche riducono significativamente il rischio di epidemie. I moderni approcci genomici e i programmi di miglioramento genetico danno speranza per la creazione di varietà resistenti che in futuro garantiranno una produzione più stabile e sicura delle colture di cavolo. Così, la lotta contro il marciume nero si sta gradualmente trasformando da un compito difficile in un processo gestibile basato sulla conoscenza, la prevenzione e il progresso scientifico.
Bibliografia
- Cruz, J., Tenreiro, R., and Cruz, L. (2017). Assessment of diversity of Xanthomonas campestris pathovars affecting cruciferous plants in Portugal and disclosure of two novel X. campestris pv. campestris races. J. Plant Pathol. 99, 403–414. doi: 10.4454/jpp.v99i2.3890
- Deng, S., Kong, C., Ma, H., Ji, J., Wang, Y., Zhang, Y., Zhuang, M., Yang, L., Fang, Z., Taranov, V., Artemyeva, A. M., & Lv, H. (2023). Genetic and cellular basis of resistance to black rot caused by Xanthomonas campestris pv. campestris in Brassica rapa. Horticulturae, 11(6), 626.
- Fargier, E., and Manceau, C. (2007). Pathogenicity assays restrict the species Xanthomonas campestris into three pathovars and reveal nine races within X. campestris pv. campestris. Plant Pathol. 56, 805–818. doi: 10.1111/j.1365- 3059.2007.01648.x
- Lema, M., Cartea, M. E., Sotelo, T., Velasco, P., and Soengas, P. (2012a). Discrimination of Xanthomonas campestris pv. campestris races among strains from northwestern Spain by Brassica spp. genotypes and rep-PCR. Eur. J. Plant Pathol. 133, 159–169. doi: 10.1007/s10658-011-9929-5
- Liu, Z., Wang, H., Wang, J., Lv, J., Xie, B., Luo, S., Wang, S., Zhang, B., Li, Z., Yue, Z., & Yu, J. (2022). Physical, chemical, and biological control of black rot of Brassicaceae vegetables: A review. Frontiers in Microbiology, 13, 1023826.
- Preethi, S., & Umesha, S. (2025). Comprehensive insights into black rot of crucifers: Pathogen–host dynamics and sustainable control methods. Journal of Plant Diseases and Protection, 132.
- Singh, D., and Dhar, S. (2011). Bio-PCR based diagnosis of Xanthomonas campestris pathovars in black rot infected leaves of crucifers. Indian Phytopathol. 64, 506–516
- Vega-Álvarez, C., Francisco, M., and Soengas, P. (2021). Black rot disease decreases young Brassica oleracea plants' biomass but has no effect in adult plants. Agronomy 11:569. doi: 10.3390/agronomy11030569
- Vicente, J. G., and Holub, E. B. (2013). Xanthomonas campestris pv. campestris (cause of black rot of crucifers) in the genomic era is still a worldwide threat to brassica crops. Mol. Plant Pathol. 14, 2–18. doi: 10.1111/j.1364-3703.2012. 00833.x
- Vicente, J. G., Conway, J., Roberts, S. J., and Taylor, J. D. (2001). Identification and origin of Xanthomonas campestris pv. campestris races and related pathovars. Phytopathology 91, 492–499. doi: 10.1094/PHYTO.2001.91.5.492