Резюме
Черното гниене е признато като най-значимата бактериална болест по зелето и останалите култури от семейство Brassicaceae, поради широкото си разпространение, високата агресивност и значителните икономически загуби. Причинител на болестта е бактерията Xanthomonas campestris pv. campestris. Инфекцията може да започне на практика във всяка една фаза от развитието на растението — от покълване на заразено семе чак до напълно развитата му зрелост. Заболяването може да остане латентно седмици, което затруднява ранната диагностика и позволява незабелязано разпространение в посева. Освен чрез заразени семена болестта се разпространява и от почвата, растителните остатъци, както и от различни природни и механични фактори като вятър, насекоми, водни пръски, дъжд или земеделска техника.
Черното гниене е едно от най-сериозните и разрушителни бактериални заболявания по културите от семейство Brassicaceae, разпространено във всички агроклиматични зони на света (Singh and Dhar, 2011). То засяга както зеленчукови култури като зеле, карфиол, броколи, ряпа и репички, така и диви кръстоцветни видове, които служат като резервоар за патогена. Това прави болестта особено трудна за контролиране, тъй като източниците на инфекция често се намират извън обработваемите площи.
Причинителят Xanthomonas campestris pv. campestris (Pammel) Dowson е семепреносима, грам-отрицателна, аеробна бактерия, характеризираща се с висока адаптивност, значително расово разнообразие и способност за системно проникване в проводящите тъкани. Заболяването е описано като „едно от най-опустошителните“ за кръстоцветните култури, като в силно засегнати региони загубите могат да достигнат до 30% от добива (Preethi & Umesha, 2025). При благоприятни условия – обилни валежи, висока влажност и температури между 25 и 30°C – болестта става още по-вредоносна и води до значителни загуби (Vega Álvarez et al., 2021).
Инфекцията може да се случи във всеки етап от развитието на растението – от покълването на заразени семена до зрелост. Основният път на разпространение е чрез заразени семена, като дори минимални нива на бактерията могат да доведат до епидемии (Liu et al., 2022). Това е особен проблем при производството на разсад, където голям брой растения се отглеждат в ограничено пространство и инфекцията може да се разпространи бързо.
Патогенът се предава и чрез заразена почва, растителни остатъци, вятър, насекоми, аерозоли, напоителна вода, дъжд и земеделска техника (Vicente and Holub, 2013). Xanthomonas campestris pv. campestris преживява в растителни остатъци до две години, което подчертава значението на добрите хигиенни практики и правилното управление на растителните отпадъци.
Бактериите навлизат най-често през хидатодите по листните периферии – естествени отвори, през които растенията отделят вода. Хидатодите представляват своеобразни „слаби места“ в листната тъкан, тъй като са директно свързани с проводящата система и не разполагат с толкова ефективни бариери срещу патогени, колкото епидермата. Когато върху листата има капки вода от дъжд или напояване, бактериите лесно се придвижват към тези отвори и проникват в тъканите. Това обяснява защо първите симптоми често се появяват по краищата на листата – зоната, където хидатодите са най-многобройни и най-активни.
Патогенът може да проникне и през рани, причинени от машини, насекоми, животни, дъжд или вятър. Дори микроскопични повреди по епидермиса са достатъчни, за да позволят навлизането на бактериите. При силни валежи или градушка рискът от инфекция рязко се увеличава, тъй като механичните наранявания по листата и стъблата създават множество входни точки. Насекомите, които се хранят с листна тъкан, също улесняват проникването, като пренасят бактериите върху устицата и раните.
След проникване бактериите се разпространяват междуклетъчно, първо колонизират мезофила – тъканта, отговорна за фотосинтезата. В тази ранна фаза инфекцията често остава незабелязана, тъй като растението все още успява да компенсира локалните увреждания. Постепенно обаче патогенът достига до проводящата система, където се размножава интензивно и предизвиква бързо системно разпространение. В ксилема бактериите образуват екзополизахариди и ензими, които запушват проводящите съдове и нарушават движението на вода. Едновременно с това се наблюдава разпадане на ксилема, разпространение на бактерията в околните паренхимни клетки, клетъчна смърт и образуване на кухини. Тези кухини често се изпълват с бактериален ексудат, който при разрез се вижда като жълтеникави капчици.
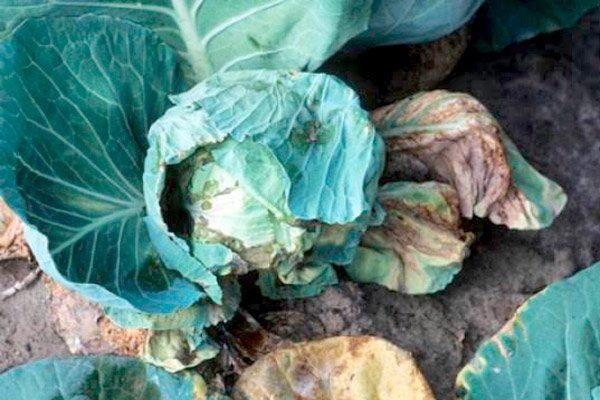
При влажно и топло време инфекцията се развива изключително бързо. Високата влажност подпомага придвижването на бактериите по листната повърхност, а топлината ускорява деленето им – при оптимални условия популацията може да се удвои за по-малко от час. Затова видими симптоми могат да се появят в рамките на часове, особено при млади растения, чиито тъкани са по-нежни и по-податливи на системно проникване. Симптомите са силно характерни и включват (Фигура 1):
- големи, често V‑образни хлоротични петна по периферията на листата, насочени към средната жилка;
- почерняване на жилките и проводящите съдове в листата, дръжките и стъблото;
- закърняване, едностранен растеж и преждевременно опадане на листата;
- системно увяхване и потъмняване на вътрешните тъкани;
- при ряпа и репички – сухо гниене на месестите корени;
- при зеле и карфиол – обезцветяване и загниване на главите.
В напречен разрез се наблюдават почернели проводящи тъкани, жълти капчици ексудат и кухини, изпълнени с бактерии. Заразените участъци често се нападат вторично от бактерии, причиняващи меко гниене, които разрушават тъканите и отделят неприятна миризма. Това допълнително влошава качеството на продукцията и я прави негодна за консумация или съхранение.
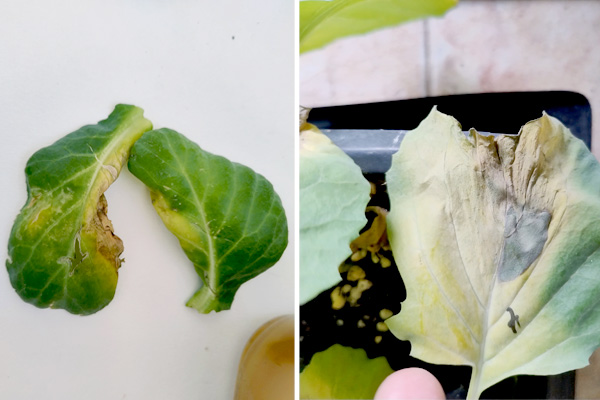
Фигура 1. Черното гниене по листата на зеле
Докладвани са множество патогенни раси на Xanthomonas campestris pv. campestris при различни Brassica видове. Първоначално Vicente et al. (2001) идентифицират шест раси (1–6). По‑късно Fargier и Manceau (2007) добавят още три (7–9), а наскоро в Португалия са описани две нови раси – 10 и 11 (Cruz et al., 2017). В момента са известни единадесет физиологични раси, като раси 1 и 4 са най‑агресивни и най‑широко разпространени (Lema et al., 2012a; Vicente and Holub, 2013).
Устойчивостта към черно гниене е полигенна и включва комплексни клетъчни и биохимични защитни механизми (Deng et al., 2023). Геномните подходи – секвениране на целия геном, мултилокусен анализ и сравнителна геномика – позволяват по‑добро разбиране на еволюцията, патогенността и разпространението на различните щамове. Тези знания подпомагат селекционните програми и ускоряват разработването на устойчиви сортове.
Ефективни лечебни средства липсват, затова управлението е предимно превантивно. Контролът на черното гниене се основава на комбинация от хигиенни, агротехнически, биологични и селекционни подходи, които целят да ограничат първичните източници на зараза и да намалят условията, благоприятстващи развитието на патогена. Най‑важните мерки включват:
• използване на семена и разсад, свободни от бактерии – това е ключов елемент, тъй като семепреносимостта е основният механизъм за възникване на епидемии. Дори минимално количество бактерии върху семената може да доведе до масово заразяване в разсадопроизводството. Затова сертифицираният семенен материал и редовното тестване чрез молекулярни методи (PCR, Bio‑PCR) са критични за безопасното начало на производствения цикъл.
• водно‑термично обеззаразяване на семена (50°C за 30 мин) – този метод е един от малкото доказано ефективни срещу Xanthomonas campestris pv. campestris. Топлината унищожава бактериите по повърхността на семето, без да уврежда кълняемостта. Процедурата е особено полезна при собствени семена или при съмнение за замърсяване.
• унищожаване на растителните остатъци и спазване на сеитбооборот (поне 2 години без Brassica) – патогенът може да преживява в растителни остатъци до две години, което прави правилното управление на отпадъците решаващо. Дългият сеитбооборот прекъсва жизнения цикъл на бактерията и намалява натрупването ѝ в почвата. Изгарянето или дълбокото заораване на заразени остатъци предотвратява вторични инфекции.
• избягване на напояване чрез дъждуване – водните пръски подпомагат придвижването на бактериите по листната повърхност и улесняват проникването им през хидатодите. При дъждуване рискът от инфекция се увеличава многократно, особено при топло време. Капковото напояване е предпочитано, тъй като поддържа листната маса суха и ограничава разпространението на патогена.
• контрол на плевелите от семейство Brassicaceae – дивите кръстоцветни видове често служат като естествен резервоар за Xcc. Плевели като синап, рапица или диви кръстоцветни могат да поддържат популацията на патогена в полето дори при отсъствие на културни растения. Редовното им премахване намалява риска от първична инфекция.
• пръскания с медни фунгициди през интервал от 10 дни за ограничаване на повърхностната бактериална популация – медните препарати не лекуват системната инфекция, но намаляват броя на бактериите по листната повърхност и ограничават вторичните заразявания. Те са най‑ефективни като част от интегрирана стратегия и прилагани превантивно, особено в периоди с висока влажност.
• биологични методи – антагонистични микроорганизми и индуктори на резистентност – това е бързо развиваща се област. Щамове на Bacillus, Pseudomonas и актиномицети показват обещаващи резултати за потискане на Xcc чрез конкуренция, производство на антимикробни вещества или стимулиране на растителния имунитет. Индукторите на резистентност активират защитните механизми на растенията, но все още се изследват за оптимални дози, стабилност и ефективност в полеви условия (Liu et al., 2022).
• дългосрочна стратегия: селекция на устойчиви сортове, подпомогната от молекулярни маркери и геномно‑асистирана селекция – това е най‑перспективният подход за трайно намаляване на загубите. Устойчивостта към черно гниене е полигенна, което прави традиционната селекция трудна. Съвременните геномни технологии позволяват идентифициране на QTL‑и, свързани с устойчивост, и ускоряват създаването на сортове, които могат да ограничат системното развитие на патогена. В бъдеще геномното редактиране и маркер‑асистираната селекция вероятно ще станат основен инструмент за контрол на болестта.
Черното гниене остава едно от най‑предизвикателните заболявания по кръстоцветните, защото съчетава висока агресивност, лесно разпространение и липса на ефективно лечение. Въпреки това навременната профилактика, внимателният семеконтрол и добрите агротехнически практики значително намаляват риска от епидемии. Съвременните геномни подходи и селекционни програми дават надежда за създаване на устойчиви сортове, които в бъдеще да осигурят по‑стабилно и безопасно производство на зелеви култури. Така борбата с черното гниене постепенно се превръща от трудна задача в управляем процес, основан на знания, превенция и научен напредък.
Още по темата:
Болести и неприятели по зеленчуковите култури от сем. Brassicaceae
Литература