Sažetak
Phytophthora infestans je veoma agresivna oomiceta koja izaziva plamenjaču krompira – jednu od najrazornijih bolesti u poljoprivredi. Patogen ima veoma kratak ciklus infekcije, masivnu sporulaciju i može uništiti useve u roku od 7–10 dana u vlažnom i hladnom vremenu. Karakteriše ga visok evolucioni potencijal, dvostruki način reprodukcije i otpornost na brojne fungicide. Suzbijanje se oslanja na kombinaciju dobrih agronomskih praksi, fungicida, prognostičkih modela i otpornih sorti.
Plamenjača krompira, koju izaziva oomiceta Phytophthora infestans, jedna je od najznačajnijih bolesti u istoriji poljoprivrede. Patogen je poznat po svojoj sposobnosti da uništi čitave useve u roku od nekoliko dana i po ogromnom uticaju na društvo – najdramatičniji primer je Irska gladi 1845–1852. godine, kada su milioni ljudi umrli ili emigrirali zbog propalih žetvi krompira. Bolest se pojavila u Severnoj Americi 1843. godine, a samo dve godine kasnije stigla je u Evropu, gde su uslovi — hladno i vlažno vreme, monokultura krompira i nedostatak otpornih sorti — omogućili patogenu da se širi neverovatnom brzinom (Yuen, 2021; Nowicki et al., 2012).
Sposobnost Ph. infestans-a da uništi čitave useve u roku od nekoliko dana posledica je njegovog izuzetno kratkog ciklusa infekcije. Sporangije se masovno proizvode na listovima, šire se vetrom i kišom i mogu izazvati nove infekcije u roku od 3–4 dana. U povoljnim uslovima — visoka vlažnost i umerene temperature — ceo usev može propasti u roku od 7–10 dana (Nowicki et al., 2012; Arora et al., 2014). Ova biološka karakteristika pretvara patogena u idealan „epidemiološki motor“, koji je 1845–1852. godine doveo do najteže poljoprivredne katastrofe u evropskoj istoriji – Irske gladi (Yuen, 2021).
Društvene posledice bile su toliko duboke da je demografska struktura Irske ostala trajno izmenjena — populacija nikada više nije dostigla nivo pre gladi (Yuen, 2021).
Ph. infestans je oomiceta koja pripada grupi eukariotskih mikroorganizama srodnih smeđim algama, a ne pravim gljivama (Arora et al., 2014). Ova karakteristika objašnjava zašto su mnogi klasični fungicidi neefikasni protiv nje. Patogen se razmnožava i bespolno i polno, što mu daje izuzetno visok evolucioni potencijal. Bespolne sporangije se masovno proizvode na listovima i mogu inficirati nove biljke u roku od 3–4 dana. Na nižim temperaturama, sporangije oslobađaju pokretne zoospore koje se kreću u vodenom filmu i izazivaju nove infekcije (Nowicki et al., 2012). Kada su prisutna oba tipa parenja – A1 i A2 – formiraju se oospore koje preživljavaju godinama u zemljištu i služe kao primarni inokulum u narednim sezonama (Arora et al., 2014; Njoroge et al., 2019).
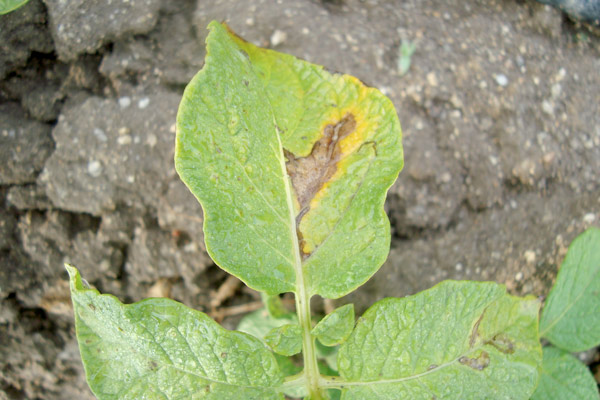
Od 1980-ih godina, u mnogim regionima primećena je široka rasprostranjenost A2 tipa parenja, što je dovelo do pojave agresivnijih genotipova, kraćeg životnog ciklusa i povećane otpornosti na fungicide. Prvi simptomi su vodene, bledo zelene lezije na listovima koje brzo potamne (Slika 1). Na naličju se pojavljuje beli rast sporangiofora. Na stabljikama se razvijaju izdužene smeđe lezije koje se lako lome. U povoljnim uslovima, cela lisna masa može uginuti u roku od nedelju dana. Na krtolama se razvijaju olovno-sive lezije koje iznutra formiraju rđasto-smeđu nekrozu. Često sekundarne bakterije izazivaju meku trulež u skladištu (Kromann et al., 2008; Arora et al., 2014; Coomber et al., 2024).
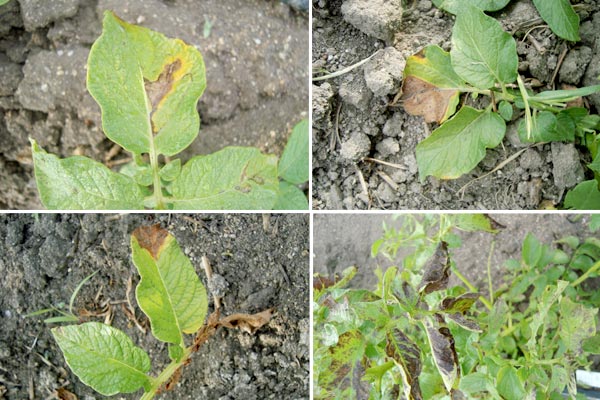
Slika 1. Simptomi plamenjače krompira
Razvoj bolesti je u velikoj meri zavisan od vlažnosti, padavina i temperatura. Sporulacija se odvija uglavnom noću, dok je svetlost suzbija (Kim and Mutschler, 2006; Arora et al., 2014).
Razvijeni su brojni prognostički modeli – Beaumont, BLITECAST, NegFry – koji omogućavaju optimizaciju primene fungicida i smanjenje troškova (Yuen, 2021).
Integrisane mere zaštite bilja uključuju:
Agronomske mere
Agronomske prakse su prva linija odbrane i igraju ključnu ulogu u smanjenju primarnog inokuluma. Oospore mogu preživeti godinama i izazvati rane infekcije, uključujući i na podzemnim stabljikama — pojava primećena u Skandinaviji (Yuen, 2021). Stoga je od kritične važnosti: uništiti biljne ostatke; izbegavati gajenje krompira na istoj lokaciji; ukloniti samonikle biljke iz prethodnih sezona. Kratki plodoredi povećavaju rizik od akumulacije oospora. Preporučuje se minimum 3–4 godine bez krompira na istoj njivi (Arora et al., 2014). Dobra drenaža zemljišta — slobodna voda je kritična za zoospore. Izbegavati prekomernu azotnu ishranu — stimuliše nežnu, osetljivu lisnu masu. Sadnja sertifikovanog, zdravog semenskog materijala (May and Ristaino, 2004).
Hemijske mere
Hemijska zaštita ostaje ključni element u upravljanju bolešću, posebno u regionima sa visokom vlažnošću. Kontaktni fungicidi - koriste se rano u sezoni kada je rizik manji: ditiokarbamati (mankozeb), hlorotalonil. Sprečavaju infekciju, ali ne leče već zaražena tkiva. Sistemični i sistemično-kontaktni fungicidi - koriste se pri povećanom riziku ili pri pojavi prvih simptoma: fenilamidi (metalaksil), cimoksanil, dimetomorf, mandipropamid, fluazinam, ciazofamid, fosetil-aluminijum (Arora et al., 2014). Metalaksil je izuzetno efikasan, ali se brzo razvija otpornost — u nekim regionima preko 60% izolata je otporno (Arora et al., 2014).
Prikladni proizvodi za suzbijanje bolesti su: RIDOMIL GOLD R WG (metalaksil-M – 20 g/kg bakar oksihlorid – 141.9 g/kg) - 500 g/ha, SIVAR GOLD (kalijum fosfonati - 255 g/l + azoksistrobin - 62.5 g/l) - 300 ml proizvoda/ha, FUNGURAN OH 50 WP (77% bakar hidroksid (50% Cu)) - 150 g/ha, CYMbal 45 WG (cimoksanil – 450 g/kg) - 25 g/ha, VITENE TRIPLO R (cimoksanil – 28.5 g/kg fosetil-aluminijum – 300 g/kg Bakar – 160 g/kg (u obliku bakar oksihlorida)) - 400 - 450 g/ha.
Prognostički modeli
Modeli kao što su Beaumont, BLITECAST, NegFry i JHULSACAST omogućavaju optimizaciju prskanja (Yuen, 2021). Oni koriste: temperaturu, vlažnost, trajanje vlaženja lista, padavine. Ovo smanjuje broj nepotrebnih tretmana i sprečava propuste koji bi mogli dovesti do potpunog uništenja useva.
Biološke mere
Biološki agensi imaju potencijal, ali je njihova efikasnost na polju ograničena.
Antagonistički mikroorganizmi: Trichoderma spp., Pseudomonas spp., Bacillus spp. pokazuju inhibiciju patogena u laboratorijskim uslovima, ali su rezultati na polju nekonzistentni (Gupta et al., 2004; Arora et al., 2014).
Plamenjača ostaje jedan od najvećih izazova u proizvodnji krompira. Patogen je izuzetno dinamičan, brzo evoluira i prevazilazi i genetičke i hemijske barijere. Kombinacija molekularnih istraživanja, otpornih sorti, prognostičkih sistema i integrisanih praksi ključ je za održivo upravljanje bolešću. Danas, Ph. infestans ostaje globalna pretnja. U mnogim zemljama, krompir je osnovna hrana, a patogen nastavlja da se prilagođava, razvija nove rase i prevazilazi otpornost sorti i fungicida. Njegov evolucioni potencijal je toliko visok da čak i savremene genetičke studije pokazuju: istorijski izolati iz 19. veka već su posedovali efektore sposobne da prevaziđu R gene, koje su oplemenjivači uveli tek u 20. veku (Liu et al., 2005; Coomber et al., 2024).
Više o temi:
Reference
- Arora, R. K., Sharma, S., & Singh, B. P. (2014). Late blight disease of potato and its management. Potato Journal, 41(1), 16.
- Coomber, A., Saville, A., & Ristaino, J.B. (2024). Evolution of Phytophthora infestans on its potato host since the Irish potato famine. Nature Communications, 15, 6488.
- Gupta H, Singh BP and Mohan J (2004) Biocontrol of late blight of potato. Potato J 31: 39-42
- Kim, M. J., and Mutschler, M. A. 2006. Characterization of late blight resistance derived from Solanum pimpinellifolium L3708 against multiple isolates of the pathogen Phytophthora infestans. J. Am. Soc. Hortic. Sci. 131:637-645.
- Kromann P, Taipe A, Andrade-Piedra JL, Munk L and Forbes GA (2008) Pre-emergence infection of potato sprouts by Phytophthora infestans in the highlands tropics of Ecuador. Plant Dis 92: 569-74
- Liu, Z., Bos, J. I. B., Armstrong, M., Whisson, S. C., da Cunha, L., TortoAlalibo, T., Win, J., Avrova, A. O., Wright, F., Birch, P. R. J., and Kamoun, S. 2005. Patterns of diversifying selection in the phytotoxin-like scr74 gene family of Phytophthora infestans. Mol. Biol. Evol. 22:659-672.
- May KJ and Ristaino JB (2004) Identity of the mtDNA haplotype(s) of Phytophthora infestans in historical specimens from the Irish potato famine. Mycol Res 108: 471-79
- Njoroge, A. W., Andersson, B., Lees, A. K., Mutai, C., Forbes, G. A., Yuen, J. E., & Pelle, R. (2019). Genotyping of Phytophthora infestans in eastern Africa reveals a dominating invasive European lineage. Phytopathology, 109(4), 670–680. https://doi.org/10.1094/ PHYTO-07-18-0234-R.
- Nowicki, M., Foolad, M.R., Nowakowska, M., & Kozik, E.U. (2012). Potato and tomato late blight caused by Phytophthora infestans: An overview of pathology and resistance breeding. Plant Disease, 96(1), 4–17.
- Rana RK, Sharma N, Arya S, Singh BP, Kadian MS, Chaturvedi R and Pandey SK (2013) Tackling moisture stress with drought-tolerant potato (Solanum tuberosum) varieties: Perception of Karnataka farmers. Indian J Agric Sci 83(2): 216-22
- Yuen, J. (2021). Pathogens which threaten food security: Phytophthora infestans, the potato late blight pathogen. Food Security, 13, 247–253.
- Yuen, J. E., & Andersson, B. (2013). What is the evidence for sexual reproduction of Phytophthora infestans in Europe? Plant Pathology, 62, 485–491. https://doi.org/10.1111/j.1365-3059.2012.02685.x.