Sommario
Phytophthora infestans è un oomicete altamente aggressivo che causa la peronospora della patata – una delle malattie più distruttive in agricoltura. Il patogeno ha un ciclo di infezione molto breve, una sporulazione massiccia e può distruggere le colture entro 7–10 giorni in condizioni di clima umido e fresco. È caratterizzato da un elevato potenziale evolutivo, una doppia modalità di riproduzione e resistenza a numerosi fungicidi. Il controllo si basa su una combinazione di buone pratiche agronomiche, fungicidi, modelli previsionali e varietà resistenti.
La peronospora della patata, causata dall'oomicete Phytophthora infestans, è una delle malattie più significative nella storia dell'agricoltura. Il patogeno è noto per la sua capacità di distruggere interi raccolti in pochi giorni e per il suo immenso impatto sulla società – l'esempio più drammatico è la carestia irlandese del 1845–1852, quando milioni di persone morirono o emigrarono a causa dei raccolti di patate falliti. La malattia comparve in Nord America nel 1843 e solo due anni dopo raggiunse l'Europa, dove le condizioni — clima fresco e umido, monocoltura di patate e mancanza di varietà resistenti — permisero al patogeno di diffondersi a un ritmo senza precedenti (Yuen, 2021; Nowicki et al., 2012).
La capacità di Ph. infestans di distruggere interi raccolti in pochi giorni è dovuta al suo ciclo di infezione estremamente breve. Gli sporangi vengono prodotti in massa sulle foglie, si diffondono tramite vento e pioggia e possono causare nuove infezioni entro 3–4 giorni. In condizioni favorevoli — elevata umidità e temperature moderate — l'intero raccolto può perire entro 7–10 giorni (Nowicki et al., 2012; Arora et al., 2014). Questa caratteristica biologica trasforma il patogeno in un ideale „motore epidemiologico“, che nel 1845–1852 portò alla più grave catastrofe agricola nella storia europea – la carestia irlandese (Yuen, 2021).
Le conseguenze sociali furono così profonde che la struttura demografica dell'Irlanda rimase permanentemente alterata — la popolazione non raggiunse mai più i livelli pre-carestia (Yuen, 2021).
Ph. infestans è un oomicete appartenente al gruppo di microrganismi eucarioti imparentati con le alghe brune, piuttosto che con i veri funghi (Arora et al., 2014). Questa caratteristica spiega perché molti fungicidi classici sono inefficaci contro di esso. Il patogeno si riproduce sia asessualmente che sessualmente, conferendogli un potenziale evolutivo eccezionalmente elevato. Gli sporangi asessuali vengono prodotti in massa sulle foglie e possono infettare nuove piante entro 3–4 giorni. A temperature più basse, gli sporangi rilasciano zoospore mobili, che si muovono in una pellicola d'acqua e causano nuove infezioni (Nowicki et al., 2012). Quando sono presenti entrambi i tipi di accoppiamento – A1 e A2 – si formano le oospore, che sopravvivono per anni nel suolo e fungono da inoculo primario nelle stagioni successive (Arora et al., 2014; Njoroge et al., 2019).
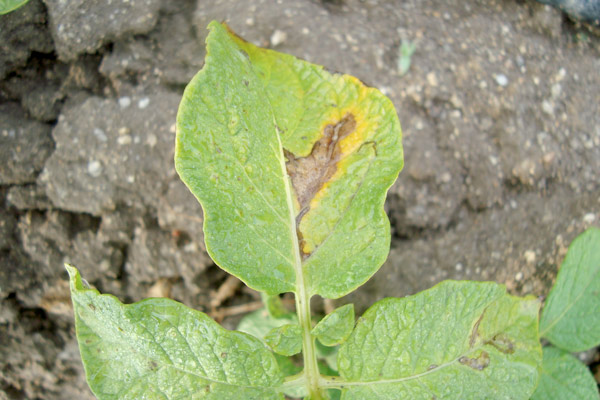
Dagli anni '80, è stata osservata un'ampia distribuzione del tipo di accoppiamento A2 in molte regioni, portando all'emergere di genotipi più aggressivi, un ciclo vitale più breve e una maggiore resistenza ai fungicidi. I primi sintomi sono lesioni acquose, di colore verde pallido sulle foglie, che si scuriscono rapidamente (Figura 1). Una crescita bianca di sporangiophora appare sulla pagina inferiore. Gli steli sviluppano lesioni marroni allungate e si spezzano facilmente. In condizioni favorevoli, l'intero fogliame può morire entro una settimana. Sui tuberi si sviluppano lesioni grigio-piombo, che formano internamente necrosi marrone-ruggine. Spesso, batteri secondari causano marciume molle in conservazione (Kromann et al., 2008; Arora et al., 2014; Coomber et al., 2024).
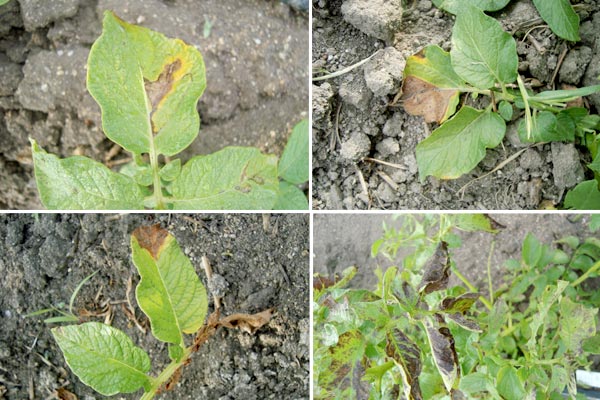
Figura 1. Sintomi della peronospora della patata
Lo sviluppo della malattia dipende fortemente da umidità, precipitazioni e temperature. La sporulazione avviene principalmente di notte, mentre la luce la sopprime (Kim e Mutschler, 2006; Arora et al., 2014).
Sono stati sviluppati numerosi modelli previsionali – Beaumont, BLITECAST, NegFry – che consentono di ottimizzare le applicazioni di fungicidi e ridurre i costi (Yuen, 2021).
Le misure di controllo integrato della malattia includono:
Misure agronomiche
Le pratiche agronomiche sono la prima linea di difesa e svolgono un ruolo chiave nella riduzione dell'inoculo primario. Le oospore possono sopravvivere per anni e causare infezioni precoci, anche sui fusti sotterranei — un fenomeno osservato in Scandinavia (Yuen, 2021). Pertanto, è di fondamentale importanza: distruggere i residui vegetali; evitare di coltivare patate nella stessa area; rimuovere le piante volontarie delle stagioni precedenti. Rotazioni brevi aumentano il rischio di accumulo di oospore. Si raccomanda un minimo di 3–4 anni senza patate nello stesso campo (Arora et al., 2014). Buon drenaggio del suolo — l'acqua libera è fondamentale per le zoospore. Evitare un'eccessiva fertilizzazione azotata — stimola un fogliame tenero e suscettibile. Piantare materiale di semina certificato e sano (May e Ristaino, 2004).
Misure chimiche
La protezione chimica rimane un elemento chiave nella gestione della malattia, soprattutto nelle regioni ad alta umidità. Fungicidi di contatto - utilizzati all'inizio della stagione quando il rischio è minore: ditiocarbammati (mancozeb), clorotalonil. Prevengono l'infezione ma non curano i tessuti già infetti. Fungicidi sistemici e sistemico-di contatto - utilizzati in condizioni di rischio aumentato o alla comparsa dei primi sintomi: fenilammidi (metalaxil), cimoxanil, dimetomorf, mandipropamide, fluazinam, ciazofamide, fosetil-alluminio (Arora et al., 2014). Il metalaxil è estremamente efficace, ma la resistenza si sviluppa rapidamente — in alcune regioni, oltre il 60% degli isolati è resistente (Arora et al., 2014).
Prodotti adatti per il controllo della malattia sono: RIDOMIL GOLD R WG (metalaxil-M – 20 g/kg ossicloruro di rame – 141,9 g/kg) - 500 g/ha, SIVAR GOLD (fosfonati di potassio - 255 g/l + azoxistrobina - 62,5 g/l) - 300 ml prodotto/ha, FUNGURAN OH 50 WP (77% idrossido di rame (50% Cu)) - 150 g/ha, CYMbal 45 WG (cimoxanil – 450 g/kg) - 25 g/ha, VITENE TRIPLO R (cimoxanil – 28,5 g/kg fosetil-alluminio – 300 g/kg rame – 160 g/kg (presente sotto forma di ossicloruro di rame)) - 400 - 450 g/ha.
Modelli previsionali
Modelli come Beaumont, BLITECAST, NegFry e JHULSACAST consentono di ottimizzare le applicazioni di irrorazione (Yuen, 2021). Utilizzano: temperatura, umidità, durata della bagnatura fogliare, precipitazioni. Ciò riduce il numero di trattamenti non necessari e previene lacune che potrebbero portare alla completa distruzione del raccolto.
Misure biologiche
Gli agenti biologici hanno potenziale, ma la loro efficacia in campo è limitata.
Microrganismi antagonisti: Trichoderma spp., Pseudomonas spp., Bacillus spp. mostrano inibizione del patogeno in condizioni di laboratorio, ma i risultati in campo sono inconsistenti (Gupta et al., 2004; Arora et al., 2014).
La peronospora rimane una delle maggiori sfide nella produzione di patate. Il patogeno è estremamente dinamico, si evolve rapidamente e supera sia le barriere genetiche che chimiche. La combinazione di ricerca molecolare, varietà resistenti, sistemi previsionali e pratiche integrate è la chiave per una gestione sostenibile della malattia. Oggi, Ph. infestans rimane una minaccia globale. In molti paesi, le patate sono un alimento di base e il patogeno continua ad adattarsi, sviluppare nuove razze e superare la resistenza delle varietà e dei fungicidi. Il suo potenziale evolutivo è così elevato che anche studi genetici moderni mostrano: gli isolati storici del XIX secolo possedevano già effettori in grado di superare i geni R, che i selezionatori hanno introdotto solo nel XX secolo (Liu et al., 2005; Coomber et al., 2024).
Approfondisci l'argomento:
Riferimenti bibliografici
- Arora, R. K., Sharma, S., & Singh, B. P. (2014). Late blight disease of potato and its management. Potato Journal, 41(1), 16.
- Coomber, A., Saville, A., & Ristaino, J.B. (2024). Evolution of Phytophthora infestans on its potato host since the Irish potato famine. Nature Communications, 15, 6488.
- Gupta H, Singh BP and Mohan J (2004) Biocontrol of late blight of potato. Potato J 31: 39-42
- Kim, M. J., and Mutschler, M. A. 2006. Characterization of late blight resistance derived from Solanum pimpinellifolium L3708 against multiple isolates of the pathogen Phytophthora infestans. J. Am. Soc. Hortic. Sci. 131:637-645.
- Kromann P, Taipe A, Andrade-Piedra JL, Munk L and Forbes GA (2008) Pre-emergence infection of potato sprouts by Phytophthora infestans in the highlands tropics of Ecuador. Plant Dis 92: 569-74
- Liu, Z., Bos, J. I. B., Armstrong, M., Whisson, S. C., da Cunha, L., TortoAlalibo, T., Win, J., Avrova, A. O., Wright, F., Birch, P. R. J., and Kamoun, S. 2005. Patterns of diversifying selection in the phytotoxin-like scr74 gene family of Phytophthora infestans. Mol. Biol. Evol. 22:659-672.
- May KJ and Ristaino JB (2004) Identity of the mtDNA haplotype(s) of Phytophthora infestans in historical specimens from the Irish potato famine. Mycol Res 108: 471-79
- Njoroge, A. W., Andersson, B., Lees, A. K., Mutai, C., Forbes, G. A., Yuen, J. E., & Pelle, R. (2019). Genotyping of Phytophthora infestans in eastern Africa reveals a dominating invasive European lineage. Phytopathology, 109(4), 670–680. https://doi.org/10.1094/ PHYTO-07-18-0234-R.
- Nowicki, M., Foolad, M.R., Nowakowska, M., & Kozik, E.U. (2012). Potato and tomato late blight caused by Phytophthora infestans: An overview of pathology and resistance breeding. Plant Disease, 96(1), 4–17.
- Rana RK, Sharma N, Arya S, Singh BP, Kadian MS, Chaturvedi R and Pandey SK (2013) Tackling moisture stress with drought-tolerant potato (Solanum tuberosum) varieties: Perception of Karnataka farmers. Indian J Agric Sci 83(2): 216-22
- Yuen, J. (2021). Pathogens which threaten food security: Phytophthora infestans, the potato late blight pathogen. Food Security, 13, 247–253.
- Yuen, J. E., & Andersson, B. (2013). What is the evidence for sexual reproduction of Phytophthora infestans in Europe? Plant Pathology, 62, 485–491. https://doi.org/10.1111/j.1365-3059.2012.02685.x.